Einstieg (0:00)
D-N-A kannst du sehen, mit Sachen aus deiner Küche. Zerdrück eine reife Erdbeere im Gefrierbeutel, mit einem Schluck Wasser, etwas Spülmittel und einer Prise Salz. Gieß den Brei durch einen Kaffeefilter in ein Glas und dann vorsichtig eiskalten Alkohol darüber. Nach ein paar Minuten steigen weiße, glibberige Fäden auf. Das ist D-N-A, mit bloßem Auge.
Diese Fäden tragen den Bauplan der Erdbeere, und in dir steckt dieselbe Sorte Molekül. Wie kann so ein Faden einen Bauplan speichern, und wie wird er vor jeder Zellteilung exakt kopiert? In den nächsten gut zwanzig Minuten baust du die D-N-A zusammen, schaust ihr beim Kopieren zu, prüfst das mit einem berühmten Versuch und löst zwei Prüfungsaufgaben. Sieht übrigens aus wie ein Erdbeer-Smoothie. Bitte nur anschauen, da ist Spülmittel drin.
Vom Erdbeerfaden bis zur fertigen Kopie, in vier Schritten. Erstens: wie die D-N-A gebaut ist. Zweitens: wie sie kopiert wird. Drittens: der Versuch, der das Kopieren aufgeklärt hat. Viertens: die Prüfungsaufgaben.
Wie die DNA gebaut ist (1:12)
Zurück zum Glas. Ein einzelner D-N-A-Faden wäre viel zu dünn zum Sehen. Was du siehst, sind Milliarden davon, verklumpt, mit etwas Beifang aus der Frucht. Das Zerdrücken bricht die Zellwände auf, und das Spülmittel löst die fettigen Hüllen der Zellen und Zellkerne, die Membranen. So kommt die D-N-A frei. In kaltem Alkohol löst sie sich nicht, deshalb flockt sie aus. Das Salz heben wir uns auf, erst schauen wir in einen Faden hinein.
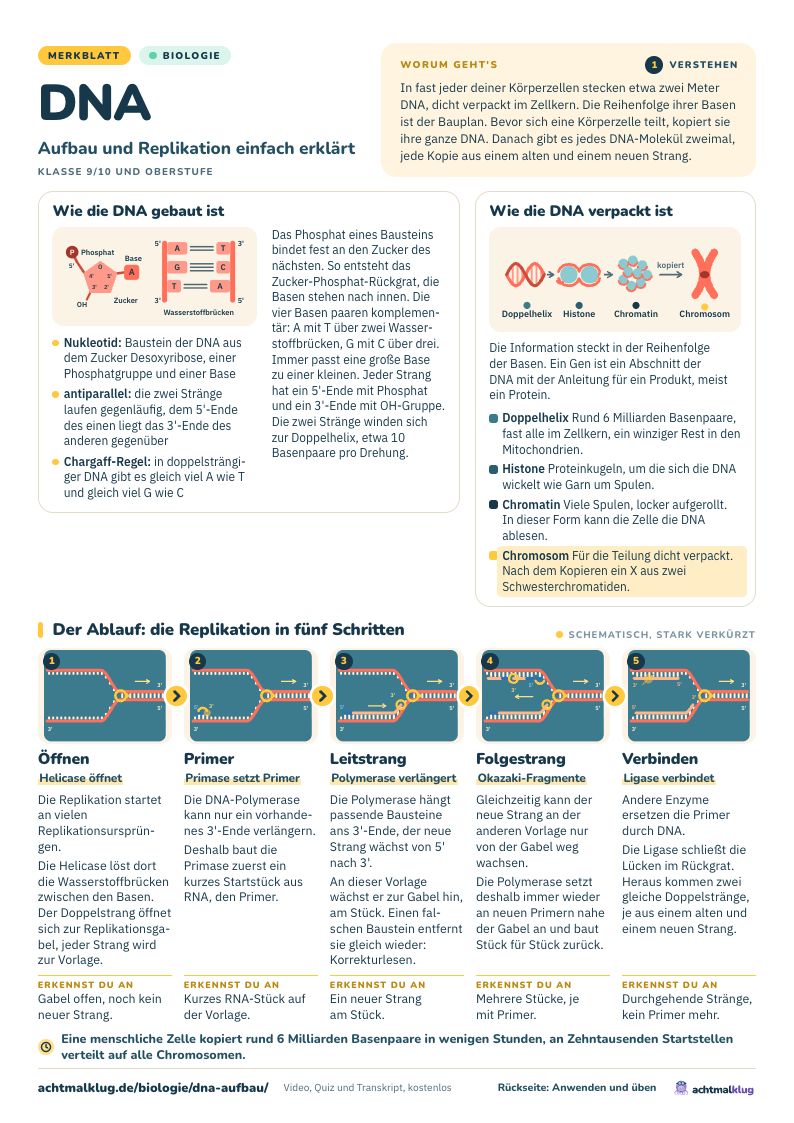
Von Nahem sieht die D-N-A aus wie ein Reißverschluss: zwei Bänder mit Zähnen, die ineinandergreifen. Jedes Stück Band mit seinem Zahn ist ein Baustein, ein Nukleotid. Es hat drei Teile: einen Zucker, eine Phosphatgruppe und eine Base. Zucker und Phosphat bilden das Band, die Base ist der Zahn. Kurz: Ein Nukleotid ist Zucker, Phosphat und Base. Der Zucker heißt Desoxyribose. Daher kommt der lange Name: Desoxyribonukleinsäure, kurz D-N-A.
Und wie hängen die Bausteine zusammen? Das Phosphat des einen Nukleotids bindet fest an den Zucker des nächsten. So entsteht eine Kette, abwechselnd Zucker, Phosphat, Zucker, Phosphat: das Rückgrat des Strangs. Und jetzt das Salz: Die Phosphatgruppen sind negativ geladen und stoßen sich ab. Das Salz schirmt die Ladungen ab, erst dann verklumpen die Fäden im Alkohol.
Zurück zum einzelnen Strang. Er hat außerdem eine Richtung. Stell dir eine Polonaise vor: Jeder legt die Hände auf die Schultern der Person vor sich. Ganz vorne sind Hände frei, ganz hinten Schultern. Wer neu mitmacht, hängt sich hinten an. Genauso hat ein D-N-A-Strang zwei verschiedene Enden, benannt nach den nummerierten Kohlenstoffatomen des Zuckers: fünf-Strich und drei-Strich.
Am fünf-Strich-Ende sitzt ein freies Phosphat, das sind die Hände. Am drei-Strich-Ende sitzt eine freie O-H-Gruppe, das sind die Schultern. Kurz: Ein Strang läuft von fünf-Strich nach drei-Strich.
Und die Zähne des Reißverschlusses? Das sind die Basen, und es gibt vier: Adenin, Thymin, Guanin und Cytosin, kurz A, T, G und C. Ab jetzt reichen die Buchstaben. Liegen sich zwei Stränge gegenüber, greifen ihre Basen ineinander wie Puzzleteile, nach einer festen Regel: A paart mit T, G mit C. Solche Partner heißen komplementär. Aber warum nicht A mit G?
Zuerst wegen der Größe. A und G sind groß, mit zwei Ringen, die Purine. T und C sind klein, mit einem Ring, die Pyrimidine. Zwischen die Bänder passt genau ein großer und ein kleiner Partner. Groß mit groß wäre zu breit, klein mit klein zu schmal. Aber A und C wären auch groß und klein. Warum passen die nicht?
Weil die Basen über Wasserstoffbrücken zusammenhalten, schwache Anziehungskräfte, wie kleine Druckknöpfe. A und T haben zwei passende Druckknöpfe, G und C drei. Bei A und C treffen dagegen Knopf auf Knopf und Gegenstück auf Gegenstück, da rastet nichts ein. Also: A mit T über zwei Wasserstoffbrücken, G mit C über drei. Deshalb hält ein G-C-Paar fester als ein A-T-Paar. Aber ist so schwach nicht ein Nachteil? Im Gegenteil: Nur deshalb kann der Reißverschluss aufgehen, zum Ablesen und zum Kopieren.
Gegenläufig und verdreht (4:42)
Und wenn zwei Stränge so ineinandergreifen, in welche Richtung laufen sie dann? Immer gegenläufig, wie zwei Polonaisen, die aneinander vorbeitanzen. Dem fünf-Strich-Ende des einen Strangs liegt das drei-Strich-Ende des anderen gegenüber. Das heißt antiparallel.
Ein Beispiel, ganz langsam. Auf dem oberen Strang steht, von fünf-Strich nach drei-Strich: G, A, T, T, A, C, A, G. Gegenüber von G steht ein C. Gegenüber von A ein T. Gegenüber von T ein A, und noch einmal A. Dann aus A ein T, aus C ein G, aus A ein T, aus G ein C. Der untere Strang lautet also C, T, A, A, T, G, T, C, von drei-Strich nach fünf-Strich. Diese acht Basenpaare begleiten uns durchs ganze Video.
Und warum Doppelhelix? Weil der Reißverschluss nicht flach liegt. Er ist verdreht wie eine Wendeltreppe: Die Basenpaare sind die Stufen, die beiden Rückgrate das Geländer. Dazu kommt: Die flachen Basenpaare liegen wie Münzen in einem Stapel aufeinander, auch das hält die Helix zusammen. Eine volle Drehung braucht etwa zehn Basenpaare. Diese Form haben James Watson und Francis Crick neunzehnhundertdreiundfünfzig aufgeklärt, mit Röntgenbildern von Rosalind Franklin.
Aus der Paarungsregel folgt etwas Messbares. Zählen wir die Basen unseres Beispiels, in beiden Strängen: fünfmal A, fünfmal T, dreimal G, dreimal C. Fällt dir was auf? Genauso viel A wie T, genauso viel G wie C. Das gilt für jede doppelsträngige D-N-A, denn jedes A hat ein T als Partner, jedes G ein C. Das ist die Chargaff-Regel, nach dem Biochemiker Erwin Chargaff.
Aber wo steckt der Bauplan? Nicht in den Bausteinen selbst, sondern in ihrer Reihenfolge. Beim Morsen reichen sogar zwei Zeichen, kurz und lang, für jeden Satz. Die D-N-A hat vier. Ein Abschnitt mit der Anleitung für ein bestimmtes Produkt, meist ein Protein, heißt Gen. Ein Gen ist also nur ein Abschnitt der D-N-A.
Und davon hast du reichlich: In fast jeder deiner Körperzellen stehen rund sechs Milliarden Basenpaare, zusammen etwa zwei Meter D-N-A. Fast die ganze D-N-A steckt im Zellkern, ein winziger Rest in den Mitochondrien, bei Pflanzen auch in den Chloroplasten. Und der Zellkern misst nur wenige Tausendstel Millimeter. Als würdest du etwa zwanzig Kilometer hauchdünnen Faden in einen Tennisball stopfen. Wie geht das? Die D-N-A wickelt sich um Proteinkugeln, die Histone, wie Garn um Spulen. Viele solche Spulen, locker aufgerollt, ergeben das Chromatin. In dieser lockeren Form kann die Zelle sie ablesen.
Für eine Zellteilung aber wird das Chromatin viel enger aufgewickelt. Erst dann entstehen die kompakten Chromosomen, die man im Mikroskop sieht. Ein Chromosom ist also ein D-N-A-Molekül mit seinen Proteinen, mal locker, mal dicht verpackt. Beim Menschen sind es sechsundvierzig, zwei Sätze zu je dreiundzwanzig. Funfact: Die Gartenerdbeere hat acht Chromosomensätze, die Walderdbeere nur zwei. In jeder Zelle steckt also mehr D-N-A, und weil die reife Frucht so weich ist, kommt sie leicht heraus. Acht Sätze. Endlich jemand, der mich versteht.
Und die bekannte X-Form? Die hat ein Chromosom nur zu Beginn einer Zellteilung. Dann ist es schon kopiert und dicht verpackt: Zwei gleiche D-N-A-Moleküle hängen zusammen, die Schwesterchromatiden. Merksatz: Die D-N-A ist eine Doppelhelix aus zwei antiparallelen Strängen. A paart mit T, G mit C, und die Reihenfolge der Basen ist die Information. Bleibt die Frage: Wie entstehen die zwei gleichen Kopien im X?
Wie die DNA kopiert wird (8:47)
Die Antwort steckt in der Paarungsregel. Wenn A immer zu T passt und G zu C, legt jeder Strang fest, wie sein Partner aussieht. Ein Strang reicht also, um den anderen neu zu bauen. Und kopieren muss die Zelle oft: vor jeder Teilung sechs Milliarden Basenpaare, in wenigen Stunden.
Stell dir wieder den Reißverschluss vor. Die Zelle öffnet ihn, und an jeder offenen Hälfte wächst eine neue Hälfte nach. Am Ende hast du zwei Reißverschlüsse, jeder halb alt, halb neu. So läuft die Replikation, das Kopieren der D-N-A. Das Prinzip heißt semikonservativ: Semi heißt halb, konservativ heißt bewahrend. Eine Hälfte bleibt erhalten.
An unserem Beispiel. Der Doppelstrang öffnet sich. Der obere Strang bekommt einen neuen Partner: C, T, A, A, T, G, T, C, also genau das, was vorher unten stand. Der untere bekommt ebenfalls einen neuen, und der gleicht dem alten oberen. Heraus kommen zwei Doppelstränge, beide genau wie das Original. Merksatz: Die Replikation ist semikonservativ. Jeder neue Doppelstrang besteht aus einem alten und einem neuen Strang.
Wo fängt die Zelle an? An Startstellen, den Replikationsursprüngen. Dort öffnet sich der Doppelstrang zu einer Blase, die in beide Richtungen wächst. An ihren Rändern trennen sich die Stränge wie die Zinken einer Gabel: die Replikationsgabel. Bakterien haben meist einen Ursprung, deine Zellen Zehntausende, verteilt auf alle Chromosomen. Denn bei dir kommen an jeder Gabel nur einige Dutzend Bausteine pro Sekunde dazu, mit einem einzigen Start bräuchte ein großes Chromosom Wochen. Kurz: viele Startstellen, und an jeder laufen zwei Gabeln auseinander.
Vier Werkzeuge an der Gabel (10:39)
Schauen wir in eine Gabel hinein. Dort arbeiten Werkzeuge der Zelle, Enzyme. Vier davon lernst du kennen, und du erkennst sie an der Endung ase. Das erste sitzt ganz vorne: die Helicase. Sie löst die Wasserstoffbrücken zwischen den Basen, eine nach der anderen, und der Reißverschluss geht auf. Hier zahlt sich aus, dass die Brücken schwach sind. Jetzt liegen die Basen beider Stränge frei, und jeder Strang wird zur Vorlage.
Dann kommt das wichtigste Werkzeug, die D-N-A-Polymerase. Sie liest die Vorlage und hängt die passenden Bausteine an den neuen Strang. Dabei gilt eine strenge Regel, wie bei der Polonaise: Neue Bausteine kommen nur hinten dran, ans freie drei-Strich-Ende. Deshalb wächst jeder neue Strang von fünf-Strich nach drei-Strich. Und weil die beiden Stränge gegenläufig liegen, liest sie die Vorlage von drei-Strich nach fünf-Strich. Kurz: Neue Bausteine kommen nur ans drei-Strich-Ende.
Und wie fängt die Polymerase an? Gar nicht von allein. Sie kann nur verlängern, braucht also schon ein freies drei-Strich-Ende. Ohne erste Person keine Polonaise. Für diese erste Person sorgt ein weiteres Werkzeug, die Primase. Sie baut ein kurzes Startstück, den Primer, aus R-N-A, einer nahen Verwandten der D-N-A. Der Primer ist nur geliehen, später muss er wieder raus. Also: Die Primase setzt den Primer, die Polymerase verlängert ihn.
Jetzt wird es spannend, denn die beiden Vorlagen laufen gegenläufig. Stell dir jede freie Vorlage als Zaun vor, der nach rechts immer länger wird, weil sich die Gabel weiter öffnet. Die Polymerase ist jemand, der ihn streicht. An der einen Vorlage zeigt das drei-Strich-Ende des neuen Strangs genau nach rechts, zur Gabel. Hier streicht sie einfach in die Richtung, in die der Zaun wächst: Sie folgt der Helicase und baut am Stück. Dieser Strang heißt Leitstrang. Er entsteht kontinuierlich, ohne Unterbrechung.
An der anderen Vorlage liegt das drei-Strich-Ende andersherum. Der neue Strang müsste nach links wachsen, weg von der Gabel. Kann die Polymerase nicht einfach umdrehen? Nein. Sie hängt nur am drei-Strich-Ende an. Das ist, als dürfte sie den Zaun nur nach links streichen, während er rechts immer länger wird. Also springt sie ein Stück nach rechts, ans neue Ende, und streicht zurück bis zum gestrichenen Stück. Immer wieder.
Genau so entsteht dieser Strang: Stück für Stück, jedes mit eigenem Primer, also diskontinuierlich, mit Unterbrechungen. Er heißt Folgestrang, denn er folgt der Gabel immer ein Stück hinterher. Die Stücke heißen Okazaki-Fragmente. Okazaki-Fragmente. Klingt wie ein Anime. Benannt sind sie nach dem japanischen Forscherpaar Okazaki. Merksatz: Der Leitstrang entsteht am Stück, der Folgestrang in Okazaki-Fragmenten, weil die Polymerase nur am drei-Strich-Ende verlängert.
Bleiben die Primer. Sie sind aus R-N-A und gehören nicht in die fertige D-N-A. Andere Enzyme ersetzen sie durch D-N-A-Bausteine. Zwischen den Stücken bleibt dann eine winzige Lücke im Rückgrat. Die schließt das letzte Werkzeug, die Ligase, wie eine letzte Naht. Merksatz: Die Primer werden durch D-N-A ersetzt, die Ligase verbindet die Fragmente.
Und jetzt alles zusammen, an unserem Beispiel. Die Helicase öffnet. Unten läuft die Polymerase glatt mit, oben setzt sie Stück für Stück neu an, und die Ligase schließt die Lücken. Am Ende stehen zwei Doppelstränge da, beide mit derselben Basenfolge wie das Original. Jede Kopie ist halb alt, halb neu.
Dr. Krake: Hoppla. Meine frische Kopie hat Besuch.
Bärtierchen: Türsteher. Strahlenschäden lass ich kaum rein. Ich hab D-Sup, ein Schutzprotein für meine D-N-A. Hat nicht jedes Bärtierchen.
Dr. Krake: Und das hilft?
Bärtierchen: Mein D-Sup-Gen, eingebaut in menschliche Zellen: nach Röntgenstrahlung deutlich weniger D-N-A-Brüche.
Dr. Krake: Krieg ich auch einen Türsteher?
Bärtierchen: Sorry. Du stehst nicht auf der Liste.
Na gut, dann ohne Türsteher. Gegen Fehler beim Kopieren passt deine Zelle selbst auf. Greift die Polymerase mal den falschen Baustein, etwa C gegenüber T, passt die Form nicht. Sie merkt das, geht einen Schritt zurück, entfernt den falschen Baustein und setzt den richtigen ein. Das heißt Korrekturlesen. Zusammen mit weiteren Reparaturen bleibt am Ende nur etwa ein Fehler auf eine Milliarde Bausteine. Merksatz: Helicase öffnet, Primase setzt Primer, Polymerase verlängert nur am drei-Strich-Ende, Ligase verbindet. Heraus kommen zwei identische Doppelstränge.
Deep Dive, der Meselson-Stahl-Versuch (15:34)
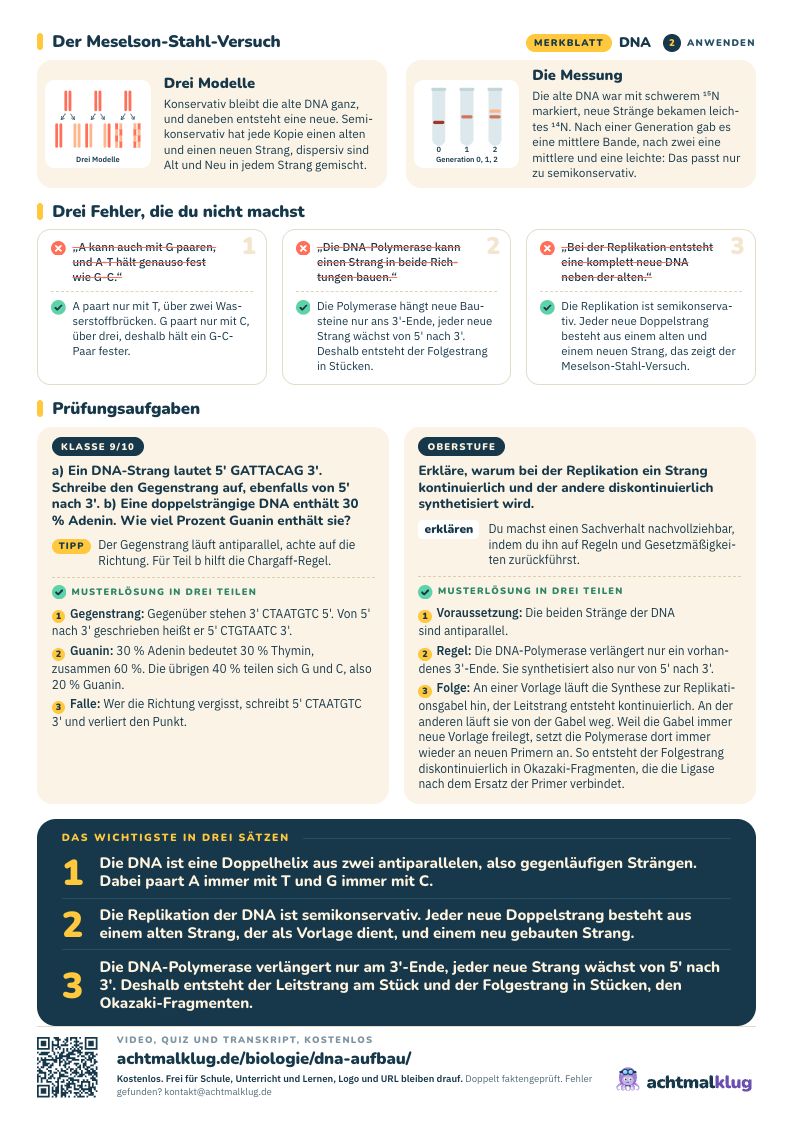
Halb alt, halb neu, das klingt logisch. Aber woher weiß man das eigentlich? Es gab drei Ideen. Erstens: Die alte D-N-A bleibt ganz, daneben entsteht eine komplett neue, wie beim Kopierer. Das wäre konservativ. Zweitens: Jede Kopie besteht aus einem alten und einem neuen Strang, also semikonservativ. Drittens: Alte und neue Stücke sind in jedem Strang gemischt, wie ein Flickenteppich. Das nennt man dispersiv.
Neunzehnhundertachtundfünfzig prüften das zwei junge Forscher, Matthew Meselson und Franklin Stahl. Ihr Problem: Alte und neue D-N-A sehen gleich aus. Ihre Idee: die alte etwas schwerer machen. Dafür nahmen sie Stickstoff, der in jeder Base steckt. Davon gibt es zwei stabile Sorten, Isotope. Üblich ist Stickstoff vierzehn. Stickstoff fünfzehn hat ein Neutron mehr und ist etwas schwerer.
Zuerst wuchsen Bakterien der Art E. coli viele Generationen lang in einer Nährlösung mit Stickstoff fünfzehn. Danach war ihre gesamte D-N-A schwer. Dann kamen sie in eine Nährlösung mit Stickstoff vierzehn. Ab jetzt ist jeder neu gebaute Strang leicht. Nach jeder Generation nahmen sie eine Probe. Wie schwer ist die D-N-A jetzt?
Aber wie wiegt man D-N-A? Ein Trick aus der Küche: unten Salzwasser, darüber Leitungswasser. Ein Ei sinkt hinein und bleibt dort schweben, wo das Wasser genauso dicht ist wie das Ei. Meselson und Stahl schleuderten die D-N-A stundenlang in einer Zentrifuge, gelöst in einem schweren Salz. Dabei wird die Lösung nach unten immer dichter, ein Dichtegradient. Jede D-N-A schwebt dort, wo die Lösung so dicht ist wie sie selbst, als schmaler Streifen: eine Bande.
Stundenlang Schleudergang. Ich bin Wellengang gewohnt, aber da würde selbst mir schwindelig. Schwere D-N-A schwebt also weiter unten, leichte weiter oben. Und Generation null? Eine einzige Bande, unten, dort wo schwere D-N-A schwebt. Alles schwer, wie geplant.
Nach einer Generation: Was sagt jedes Modell voraus? Konservativ: Die alte D-N-A bleibt schwer, die neue ist leicht. Zwei Banden, unten und oben. Semikonservativ: Jeder Doppelstrang hat einen schweren und einen leichten Strang. Eine Bande in der Mitte. Dispersiv: Jeder Strang ist halb schwer, gemischt. Ebenfalls eine Bande in der Mitte. Gemessen: eine einzige Bande, genau in der Mitte.
Damit ist das konservative Modell raus. Es entsteht also keine komplett neue D-N-A neben der alten. Dann semikonservativ, fertig? Noch nicht. Das dispersive Modell sagt dasselbe voraus. Erst die zweite Generation trennt die beiden.
Nach zwei Generationen. Semikonservativ: Die mittleren Doppelstränge öffnen sich wieder, und jeder Strang bekommt einen leichten Partner. Das ergibt zwei mittlere und zwei leichte Doppelstränge. Also zwei Banden, Mitte und oben, gleich stark. Dispersiv: Alles wird noch einmal gleichmäßig gemischt. Also wieder nur eine Bande, zwischen Mitte und oben.
Und gemessen? Zwei Banden, eine in der Mitte, eine oben, gleich stark. Genau wie semikonservativ vorhergesagt. Merksatz: Der Meselson-Stahl-Versuch zeigt, dass die Replikation semikonservativ ist. Nach einer Generation gibt es eine mittlere Bande, nach zwei Generationen eine mittlere und eine leichte.
Prüfung (19:17)
Die Zentrifuge hat Feierabend. Zurück zu unseren acht Basenpaaren, die warten nämlich auf dich. Aufgabe eins, Niveau Klasse neun und zehn. Teil a: Der obere Strang lautet von fünf-Strich nach drei-Strich G, A, T, T, A, C, A, G. Schreibe den Gegenstrang auf, ebenfalls von fünf-Strich nach drei-Strich. Teil b: Eine doppelsträngige D-N-A enthält dreißig Prozent Adenin. Wie viel Prozent Guanin? Drück Pause. Ich tanz derweil Polonaise. Allein. Vorne und hinten gleichzeitig.
Lösung zu Teil a: Gegenüber stehen C, T, A, A, T, G, T, C, aber das ist von drei-Strich nach fünf-Strich gelesen. Rückwärts, also von fünf-Strich nach drei-Strich: C, T, G, T, A, A, T, C. Die Falle: Wer die Richtung vergisst, verliert den Punkt. Teil b: Dreißig Prozent Adenin heißt dreißig Prozent Thymin, zusammen sechzig. Bleiben vierzig für G und C, also je zwanzig Prozent.
Eine Stufe schwerer. Aufgabe zwei, Niveau Oberstufe: „Erklären Sie, warum bei der Replikation ein Strang kontinuierlich und der andere diskontinuierlich synthetisiert wird.“ Erklären heißt: einen Sachverhalt nachvollziehbar machen, indem du ihn auf Regeln und Gesetzmäßigkeiten zurückführst. Drück Pause und formuliere.
Volle Punkte gibt es für drei Teile. Erstens, die Voraussetzung: Die beiden Stränge sind antiparallel. Zweitens, die Regel: Die D-N-A-Polymerase verlängert nur ein vorhandenes drei-Strich-Ende, sie synthetisiert also nur von fünf-Strich nach drei-Strich. Drittens, die Folge: An einer Vorlage läuft die Synthese in Richtung der Replikationsgabel, der Leitstrang entsteht kontinuierlich. An der anderen läuft sie von der Gabel weg. Weil sich die Gabel weiter öffnet und immer neue Vorlage frei wird, muss die Polymerase dort immer wieder an neuen Primern ansetzen. Der Folgestrang entsteht also diskontinuierlich, in Okazaki-Fragmenten, die die Ligase nach dem Ersatz der Primer verbindet.
Merk dir drei Dinge (21:38)
Das war die D-N-A. Merk dir drei Dinge. Erstens: Die D-N-A ist eine Doppelhelix aus zwei antiparallelen Strängen, A paart mit T, G mit C. Zweitens: Die Replikation ist semikonservativ, jede Kopie besteht aus einem alten und einem neuen Strang. Drittens: Die Polymerase verlängert nur am drei-Strich-Ende, deshalb entsteht der Folgestrang in Stücken. Das Quiz und den Lernzettel zu diesem Video findest du kostenlos auf achtmalklug punkt de. Klemmt bei dir mal ein Reißverschluss? Ruf die Helicase. Bleib neugierig.